ミカエリス・メンテン式を完全攻略!KmとVmaxの意味や導出を徹底解説
薬学部や理学部、農学部などの生化学の講義で、多くの学習者が最初に突き当たる大きな壁が酵素反応速度論の基礎をなす「ミカエリス・メンテン式」です。アルファベットや数式が並ぶテキストを見て、思わずアレルギー反応を起こしてしまう方も少なくありません。
しかし、式の成り立ちと各パラメータの物理的な意味を丁寧に紐解けば、決して難解な理論ではないことが見えてきます。本記事では、生化学のつまずきポイントをゼロから解消できるよう、式の導出からグラフの読み解き方、試験頻出の阻害様式までを論理的かつ明快に整理してお届けします。
📌 【この記事の重要ポイントまとめ】
- 要点1:ミカエリス・メンテン式は、基質濃度と酵素反応速度の関係性を定量的に示す酵素反応速度論の基本公式。
- 要点2:Km(ミカエリス定数)は酵素と基質の親和性の指標であり、Vmaxは酵素がフル稼働した際の限界速度を示す。
- 要点3:ラインウィーバー=バークプロットを使えば、実験値からKmやVmaxを正確に算出し、阻害剤のタイプを判定できる。
【基礎知識】ミカエリス・メンテン式とは?基質濃度と反応速度のグラフの基本
酵素が関与する化学反応において、「基質(反応物)の濃度を上げると、反応スピードはどのように変化するのか」を数式化したものがミカエリス・メンテン式です。酵素反応では、まず遊離の酵素(E)と基質(S)が結合して酵素基質複合体(ES複合体)を形成し、そこから生成物(P)と元の酵素(E)へと変換されます。
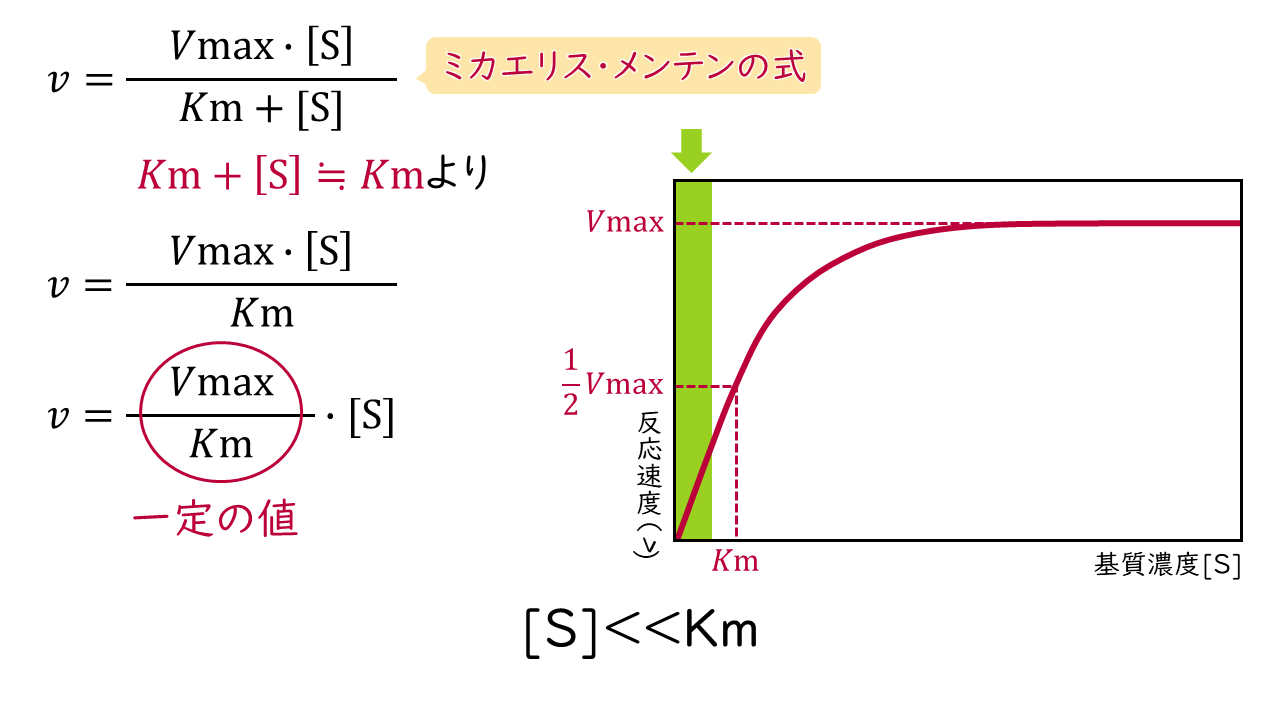
横軸に基質濃度 $[S]$、縦軸に初期反応速度 $v$ をとってプロットすると、グラフはきれいな直角双曲線を描きます。基質濃度がごく薄い段階では反応速度は濃度に比例して直線的に上昇しますが、濃度が高くなるにつれて上昇カーブは緩やかになり、最終的には一定の速度へと収束していきます。
この頭打ちになる現象こそが、酵素反応の最大の特徴です。どれだけ基質を追加しても、すべての酵素分子が基質と結合してES複合体になりきってしまうと、それ以上は処理速度が上がりません。この飽和現象をシンプルな数式に落とし込んだ点が、本理論の画期的な功績です。
【徹底解剖】ミカエリス定数Kmの意味と最大反応速度Vmaxの求め方
ミカエリス・メンテン式をマスターする上で絶対に外せない2大パラメータが、ミカエリス定数(Km)と最大反応速度(Vmax)です。
まず最大反応速度Vmaxの求め方とその意味について確認します。Vmaxは、系内に存在するすべての酵素が基質で満たされ、ES複合体として100%稼働したときの限界速度を指します。どれほど基質濃度を高めても、反応速度がVmaxを超えることは原理的にありません。
続いて、多くの学習者が混乱しやすいミカエリス定数Kmの意味を整理します。数式上の定義では「反応速度が最大値の半分($v = \frac{1}{2}Vmax$)に達するときの基質濃度」を指します。単位は基質濃度と同じモル濃度(mol/Lなど)で表されます。
直感的な理解として重要なのは、Km値が小さいほど「酵素と基質の親和性が高い(くっつきやすい)」という点です。わずかな基質濃度でも素早く半分まで反応速度が立ち上がるため、効率よく基質をキャッチできる酵素であることを示します。反対にKm値が大きい酵素は親和性が低く、反応を進めるためにより多くの基質を必要とします。
【生化学の難所を突破】定常状態近似法によるミカエリス・メンテン式の導出過程
教科書で数式変形が長く続き、挫折の原因になりやすいのがミカエリス・メンテン式の導出過程です。ここでは現在標準的に用いられているブリッグスとホールデンによる定常状態近似法を用いて、そのロジックを段階的に追っていきます。
反応全体の素反応は以下のように記述されます。
$$E + S \underset{k_{-1}}{\overset{k_1}{\rightleftharpoons}} ES \xrightarrow{k_2} E + P$$
ここで $k_1$ は結合の速度定数、$k_{-1}$ は解離の速度定数、$k_2$(あるいは $k_{cat}$)は生成物形成の速度定数です。
定常状態近似法の根幹にあるのは、「反応が始まって定常状態に達した直後、ES複合体の濃度変化はゼロと見なせる(生成速度=分解速度)」という仮定です。この仮定を立式すると次のようになります。
$$\frac{d[ES]}{dt} = k_1[E][S] - (k_{-1} + k_2)[ES] = 0$$
全酵素濃度を $[E]_0 = [E] + [ES]$ として遊離の酵素濃度 $[E] = [E]_0 - [ES]$ を代入し、式を $[ES]$ について整理します。ここで定数部分をひとまとめにしたのがミカエリス定数 $Km$ です。
$$Km = \frac{k_{-1} + k_2}{k_1}$$
これを用いると、ES複合体の濃度は次のように求まります。
$$[ES] = \frac{[E]_0[S]}{Km + [S]}$$
生成物ができる速度は $v = k_2[ES]$ であり、全酵素がES複合体になったときの最大速度は $Vmax = k_2[E]_0$ であるため、これらを代入することで有名な基本式が完成します。
$$v = \frac{Vmax[S]}{Km + [S]}$$
一見すると複雑な数式ですが、「ES複合体の生成と分解のバランスが取れている」という前提から一本道で導き出せる論理的な構造になっています。
【グラフを直線化】ラインウィーバー=バークプロットの傾きと切片
実験で得られたデータからVmaxやKmを決定しようとする際、双曲線のグラフから目視で漸近線(Vmax)を正確に読み取るのは困難です。そこで考案されたのが、ミカエリス・メンテン式の両辺の逆数をとって一次関数の直線グラフに変換するラインウィーバー=バークプロット(二重逆数プロット)です。
基本式の両辺の逆数を取ると、以下の形に変形されます。
$$\frac{1}{v} = \frac{Km + [S]}{Vmax[S]} = \left(\frac{Km}{Vmax}\right)\frac{1}{[S]} + \frac{1}{Vmax}$$
横軸に $\frac{1}{[S]}$、縦軸に $\frac{1}{v}$ を取ると、$y = ax + b$ の直線関係が得られます。試験やレポートで必須となる逆数プロットの傾きと切片のポイントは以下の3点です。
・y切片: $\frac{1}{Vmax}$ (直線の縦軸との交点)
・x切片: $-\frac{1}{Km}$ (直線の横軸との交点)
・直線の傾き: $\frac{Km}{Vmax}$
この直線プロットを利用すれば、実測した数点のデータから回帰直線を引き、切片を読み取るだけでKmとVmaxを高精度に算出できます。
【薬学生のための生化学まとめ】競合阻害と非競合阻害の違いを完全整理
創薬科学や薬理学において、酵素の働きを抑える阻害剤の解析は不可欠です。国家試験や定期試験でも頻出テーマである競合阻害と非競合阻害の違いを、パラメータの変化とラインウィーバー=バークプロットの動きから明確に対比させて整理します。
1. 競合阻害(拮抗阻害)
阻害剤が基質と構造的によく似ており、酵素の「活性部位」を奪い合う形式です。基質濃度を極限まで高くすれば阻害剤を追い出すことができるため、Vmaxは変化しません。一方で、見かけ上の親和性が低下するため、見かけのKmは増大します。
ラインウィーバー=バークプロットでは、y切片が同じ位置で交差し、傾きが急(x切片が原点寄り)になります。
2. 非競合阻害(非拮抗阻害)
阻害剤が活性部位とは異なるアロステリック部位などに結合し、酵素の働きそのものを低下させる形式です。基質濃度をいくら上げても阻害を解除できないため、Vmaxは低下します。一方で、基質の活性部位への結合しやすさ自体は妨げないため、Kmは不変のまま保たれます。
ラインウィーバー=バークプロットでは、x切片が共通で、y切片が上方にシフトします。
なお、ヘモグロビンや多サブユニットからなる制御酵素のように、基質の結合によって立体構造が変化し親和性が連鎖的に変わる現象をアロステリック効果と呼びます。この場合、反応曲線は双曲線ではなく「S字型(シグモイド曲線)」を描くため、単純なミカエリス・メンテン式には従わない点も重要な区別ポイントです。
【計算対策】試験で役立つ代表的な条件設定と数値関係
実際の試験や演習問題をスムーズに解くためには、式に特定の条件を当てはめたときの挙動を瞬時にイメージできる状態を作っておくのが有効です。
・$[S] = Km$ のとき:
分母が $Km + Km = 2Km$ となり、$v = \frac{Vmax \cdot Km}{2Km} = \frac{1}{2}Vmax$ となります。これがKmの定義そのものです。
・$[S] \ll Km$(基質濃度が極めて低い)のとき:
分母の $[S]$ を無視できるため、$v \approx \left(\frac{Vmax}{Km}\right)[S]$ となり、反応速度は基質濃度に比例する「一次反応」として振る舞います。
・$[S] \gg Km$(基質濃度が極めて高い)のとき:
分母の $Km$ を無視できるため、$v \approx \frac{Vmax[S]}{[S]} = Vmax$ となり、基質濃度に依存しない「ゼロ次反応」へと移行します。
これら3パターンの極限状態を頭に入れておくだけで、グラフ問題や選択肢問題の正誤判定を素早く正確に行えるようになります。
【ミカエリス・メンテン式】に関するよくある質問(FAQ)
Q1:Km値が大きい酵素と小さい酵素では、どちらが基質と結合しやすいですか?
A1:Km値が小さい酵素の方が基質と結合しやすい(親和性が高い)です。Kmは反応速度が最大値の半分に達する基質濃度を示すため、Kmが小さいほどごくわずかな基質濃度で効率よく反応を進行させることができます。
Q2:アロステリック酵素にミカエリス・メンテン式をそのまま適用できないのはなぜですか?
A2:ミカエリス・メンテン式は「1つの酵素に対して基質が1対1で独立して結合する」という前提で成り立っています。複数の結合部位が相互に影響し合うアロステリック酵素では協同性が生じ、基質濃度に対する反応速度のグラフが双曲線ではなくS字型のシグモイド曲線になるため、通常の式は適用できません(ヒルプロットなどを用います)。
Q3:ラインウィーバー=バークプロットで傾きが表すものは何ですか?
A3:直線の傾きは $\frac{Km}{Vmax}$ を表します。競合阻害剤を加えた場合、Kmが増大してVmaxが変わらないため直線の傾きが急になります。一方、非競合阻害剤を加えた場合はVmaxが低下してKmが変わらないため、こちらも同様に傾きは急になりますが、x切片($-1/Km$)が動かないという違いで見分けることができます。
まとめ:基本概念を押さえて生化学の基盤を固めよう
ミカエリス・メンテン式は、一見すると記号や数式の羅列に見えますが、本質は「酵素と基質が出会い、複合体を経て生成物へと変わる一連のドラマ」を数学的に記述した美しい理論です。
定常状態近似の背景を理解し、KmとVmaxが指し示す物理的な意味を把握できれば、ラインウィーバー=バークプロットの読み解きや各種阻害剤の判別もスムーズに整理できるようになります。基本となる双曲線の挙動と直線プロットの対応関係をしっかりと押さえ、生化学や薬理学の学習を自信を持って進めていきましょう。 (出典: ミカエリス メンテン 式(Yahoo!ニュース))


テクノロジーやライフスタイル領域を中心に執筆活動を行っています。趣味は写真撮影と旅行です。
